Микроорганизмам принадлежит исключительно важная роль в круговороте веществ в природе. Наиболее отчетливо биогеохимическая деятельность микроорганизмов проявляется в реакциях разложения органических веществ, в окислении водорода, метана, серы, в восстановлении сульфатов и во многих других процессах, обеспечивающих круговорот биогенных элементов.
КРУГОВОРОТ
АЗОТА
Азот (N) — важнейший биогенный элемент, входящий в состав белковой молекулы каждого живого существа. Азот составляет 80% атмосферы. Столб воздуха над гектаром почвы содержит до 80 тыс. т азота. Однако ни растения, ни животные не могут его использовать в данной форме. Растения потребляют азот минеральных соединений, а животные — органических соединений. Только специфическая группа микроорганизмов обладает способностью фиксировать и строить из него все разнообразие азотсодержащих органических соединений своей клетки. Источником азота для синтеза аминокислот и белков служат нитраты почвы и воды.
Цикл превращений азота в природе с участием микроорганизмов состоит из четырех этапов: фиксации атмосферного азота, аммонификации, нитрификации и денитрификации.
Фиксация атмосферного азота. Способностью фиксировать атмосферный азот и строить из него тело своей клетки обладают микроорганизмы, получившие название азотфиксирующих. Они обусловливают значительное повышение плодородия почвы.
Биологическая фиксация азота в природе осуществляется двумя группами микроорганизмов: свободноживущими (несимбиотическими) и существующими в сообществе с растениями (симбиотическими или клубеньковыми). К наиболее важным свободноживущим азотфиксаторам относятся почвенные Azotobacter chrooсоссит, Clostridium pasteurianum, Pseudomonas fluorescens. К активным азотфиксаторам относятся цианобактерии (синезеленые водоросли), обитающие во всех почвенноклиматических зонах.
Azotobacter — строгий аэроб, в молодой культуре он представляет собой крупные палочки длиной 4–6 мкм, подвижные, часто соединенные попарно, окрашивающиеся по Граму положительно. В старых культурах превалируют кокковые формы, окруженные общей капсулой. Азотобактерии в течение года на площади 1 га фиксируют от 20 до 50 кг газообразного азота, особенно интенсивно процесс фиксации происходит при хорошей аэрации почвы.
С. pasteurianum — анаэробы, полиморфные палочки длиной 1,5–8 мкм и шириной 0,8–1,3 мкм, подвижные, грамположительные, образующие споры, хорошо развивающиеся в почве при наличии аэробных бактерий. Микроб широко распространен в природе. Рисовые поля обогащаются азотом в основном за счет жизнедеятельности этого микроба.
P. fluorescens — аэроб, подвижный, грамотрицательный, длиной 2–5 мкм и шириной 0,3–0,4 мкм, обитающий в почвах разных зон и регионов.
К симбиотическим азотфиксаторам относятся бактерии рода Rhisobium (клубеньковые бактерии). Это подвижные палочки 1,2–3 мкм длиной и 0,5–0,9 мкм шириной, грамотрицательные, не образующие спор. При старении бактерии теряют подвижность. Клубеньковые бактерии способны внедряться в корневые волоски бобовых растений и развиваться в них с образованием на корнях клубеньков, где и происходит фиксация азота. Таким образом, между бактериями и растениями устанавливаются симбиотические отношения. Бактерии питаются органическими соединениями, синтезированными растениями, а растения получают из клубеньков связанные соединения азота. При достаточной аэрации почвы, влажности и температуре клубеньковые бактерии в течение года на 1 га могут зафиксировать
до 200 кг атмосферного азота, что значительно повышает плодородие почвы.
В хозяйствах с целью повышения плодородия почвы используют азотобактерин и нитрагин. Азотобактерин представляет собой живую культуру азотобактера, выращенную на нейтральном торфе или содовой почве. Вместе с посевным материалом его вносят под небобовые культуры (картофель, свекла). Нитрагин имеет две формы: ризотрофин и ризобин. Ризотрофин представляет собой смесь клубеньковых бактерий со стерильным торфом, ризобин (сухой нитрагин) — высушенную культуру клубеньковых бактерий с наполнителем (бентонит). Препараты вносят под бобовые культуры.
Аммонификация белков. Значительные запасы органического азота сохраняются в растительных и животных тканях. Компоненты тканей погибших растений и животных подвергаются действию микроорганизмов и азотистые соединения разрушаются с образованием аммиака. Этот процесс называют аммонификацией, или минерализацией азота. Процесс аммонификации может происходить как в аэробных, так и в анаэробных условиях при участии разнообразных микроорганизмов: бактерий, бацилл, клостридий, актиномицетов, плесневых грибов. Расщепление белковых веществ происходит за счет протеолитических ферментов, выделяемых микроорганизмами, названных гнилостными. Глубина расщепления белковых веществ зависит от вида микробов и условий их жизнедеятельности. За счет аэробной гнилостной микрофлоры происходит глубокий распад белка, конечными продуктами которого являются аммиак, СО2, сульфаты и вода. При распаде белка в анаэробных условиях образуется аммиак, СО2, органические кислоты, меркаптаны, а также индол, скатол, обладающие неприятным запахом. Аммонификация остатков растений, трупов, других органических субстратов ведет к обогащению почвы азотистыми продуктами. Одновременно гнилостные микробы выполняют огромную санитарную роль, очищая почву и гидросферу от разлагающегося органического субстрата.
К аэробным аммонификаторам относятся: Вас. mycoides — широко распространенная в природе подвижная палочка, грамположительная, образующая споры; Вас. subtilis — подвижная палочка, грамположительная, образующая споры;
Вас. megaterium — подвижная палочка, грамположительная. Из анаэробных микроорганизмов наиболее активны: С. putrificum — подвижная палочка, грамположительная, обнаруживается в ки- шечнике, почве, навозе; С. sporogenes — подвижная палочка, грамположительная, обнаруживается в почве, кишечнике.
Аммонификация мочевины. Подсчитано, что весь живот- ный мир земного шара за сутки выделяет более 150 тыс. т мо- чевины. В моче содержится 47% азота, поэтому она считается одним из концентрированных азотистых удобрений. Мочеви- на непригодна для азотистого питания растений, и только по- сле разложения ее микроорганизмами она становится усвояемой. Бактерии, разлагающие мочевину, называются уробактериями (urea — моча). Под действием фермента уреазы, вырабатывае- мого уробактериями, мочевина превращается в аммиак и СО2. К уробактериям относят: Вас. probatus — крупная палочка, подвижная, грамположительная, образующая споры; Sporasarcina — образует крупные шарообразные клетки, соединен- ные в пакеты, имеет жгутики.
Нитрификация — следующий за аммонификацией этап превращения азота микроорганизмами. Аммиак, образующий- ся в почве, навозе и воде при разложении органических веществ, довольно быстро окисляется сначала в азотистую, а затем в азот- ную кислоту. Протекает процесс нитрификации в две фазы. Первую фазу — окисление солей аммония до солей азотистой кислоты (нитритов) — осуществляют микроорганизмы родов Nitrosomonas, Nitrococcus, Nitrospira, Nitrosovibrio. Вторую фазу — окисление азотистой кислоты до солей азотной кисло- ты (нитраты) — осуществляют бактерии из родов Nitrobacter, Nitrospira, Nitrococcus. Образовавшаяся азотная кислота в поч- ве вступает в соединение с щелочами с образованием селитры:
HN03 + КОН = KN03 + Н2О;
2HN03 + Са(ОН)2 = Ca(NО3)2 + 2Н2О.
Селитра хорошо растворяется в воде и усваивается расте- ниями, в результате чего повышается плодородие почвы. Бак- терии рода Nitrosomonas имеют форму палочек, подвижны, грамотрицательны, с одним жгутиком, широко распростране- ны в почве. Род Nitrococystil способен образовывать зооглеи (кокковые формы микробов, окружены общей капсулой). Бак-
терии рода Nitrospira имеют правильную спиральную форму. Род Nitrobacter — полиморфные мелкие палочки, неподвижные, грамотрицательные.
Денитрификации — это процесс, обратный нитрификации. Различают прямую и косвенную денитрификацию.
Прямую денитрификацию вызывают бактерии, широко распространенные в почве, навозе, водоемах. Среди них наибольшее значение имеют: Thiobacillus denitrificans — палочка, не образующая спор, факультативный анаэроб; Pseudomonas fluorescens — подвижная палочка, грамотрицательная, образует зеленоватый пигмент; Ps. stutzeri — палочка, образующая цепочки; Paracoccus denitrificans имеет форму кокков. Денитрифицирующие бактерии восстанавливают нитраты до молекулярного азота. В почве развиваются без доступа воздуха и в щелочной среде.
Косвенная денитрификация осуществляется чисто химическим путем при взаимодействии азотистой кислоты с аминными соединениями; роль микробов сводится к образованию нитритов, главным образом из нитратов. Косвенной денитрификации способствуют самые разнообразные виды микробов, которые не только восстанавливают нитраты, но и разлагают белковые вещества с образованием аминокислот.
КРУГОВОРОТ
УГЛЕРОДА
Углерод входит в состав органических соединений, которые являются продуктами фотосинтеза. В воздухе его содержится немногим более 0,03% (по объему). Такая концентрация углекислоты (диоксида углерода) в атмосфере поддерживается относительно постоянной в результате динамического равновесия между фотосинтезом и минерализацией. О значимости круговорота углерода в природе свидетельствует расчет: весь углерод атмосферы в случае отсутствия пополнения был бы полностью исчерпан при существующей скорости фотосинтеза менее чем за 20 лет. Благодаря деятельности микроорганизмов поддерживается равновесие и круговорот СО2 на нашей планете. При минерализации органических веществ они образуют почти столько же углерода, сколько используется растениями в процессе фотосинтеза.
Роль микробов в разложении клетчатки. В состав клетчатки (целлюлозы) входит более 50% всего органического углерода биосферы. Клетчатка — наиболее распространенный полисахарид растительного мира; высшие растения на 15–50% состоят из целлюлозы. После гибели растений она подвергается разложению, в результате чего освобождается углерод. Разложение клетчатки происходит в аэробных и анаэробных условиях. В природе распад клетчатки происходит повседневно в почве, водоемах, навозе, пищеварительном тракте травоядных благодаря ферментам, которые выделяют различные микроорганизмы.
Аэробное разложение (брожение) клетчатки наиболее интенсивно происходит под влиянием следующих трех широко распространенных в природе родов микроорганизмов: Cytophaga — подвижные с заостренными концами палочки; Cetacicula — короткие с заостренными концами палочки; Ceivirio — длинные палочки, слегка изогнутые. Кроме того, в аэробных условиях клетчатку разлагают актиномицеты, грибы родов Aspergillus, Penicillum и др.
Анаэробное брожение клетчатки происходит в два этапа. Первый этап — клетчатка осахаривается, второй — сахар разлагается в зависимости от типа брожения на спирты, молочную, масляную кислоты, углекислоту, водород, метан и др. Известно, что в природе осуществляется два типа анаэробного брожения клетчатки — водородное и метановое, за счет деятельности двух анаэробных бактерий-целлюлозоразрушителей: CI. omelianskii и СI. cellobioparum. Оба микроба представляют собой крупные грамположительные палочки, подвижные, образуют споры, обитают в почве и навозе. Водородное и метановое брожение клетчатки происходит в преджелудках рогатого скота при поедании большого количества зеленой массы бобовых, особенно влажной от дождя или утренней росы, что обусловливает развитие острой тимпании рубца.
Следует особо отметить, что в рубце жвачных животных присутствуют специфические облигатные бактерии, разлагающие целлюлозу кормов до глюкозы, которая затем сбраживается с образованием органических кислот (уксусной, пропионовой, масляной, молочной, муравьиной, янтарной и др.), спиртов, газов (СО2 и Н2). Разложение целлюлозы в рубце животных осуществляют кокковидные и палочковидные бактерии:
Ruminococcus flavefaciens, Ruminococcus albus, Bactemides succinogenes, Butyrovibrio fibrisolvens, Ruminobacter parvum. Указанные бактерии имеют большое значение в питании жвачных животных.
Разложение пектиновых веществ. Разрушение погибших растений происходит при активном участии микроорганизмов, разрушающих пектиновые межклеточные вещества, связывающие растительные клетки. Пектиновое брожение обусловливают микроорганизмы, которые относятся к родам Bacillus (Вас. macerans, Bac. polimyxa), Clostridium (С. pectinovorum, С. pectinoliticum и др.). Пектиновое брожение происходит при мочке льна, конопли, джута и др. Целлюлозные волокна этих растений склеены с окружающими их тканями пектином.
Спиртовое брожение. При спиртовом брожении микроорганизмы превращают углеводы (сахара) с образованием этилового спирта — основного продукта — и углекислоты с высвобождением энергии:
С6Н12О6 = 2СН3СН2 + 2СО2 + 27кДж.
К возбудителям спиртового брожения относятся некоторые дрожжи, главным образом из рода Saccharomyces (S. cerevisiae, S. globusus, S. vini и др.). В промышленных целях используют культурные дрожжи. По структуре накапливаемой дрожжевой массы их делят на пылевидные и хлопьевидные. У пылевидных дрожжей клетки отделены, изолированы, у хлопьевидных — склеены, образуют хлопья и оседают на дно. Пылевидные дрожжи используются для производства спирта, хлопьевидные — в виноделии и пивоварении. Дрожжи лучше развиваются в кислой среде (рН 4–6) и выдерживают до 15% спирта в растворе.
В зависимости от того, в каких условиях происходит процесс (аэробный или анаэробный), дрожжи делят на дрожжи верхового и низового брожения. Дрожжи верхового брожения (S. cerevisior) находятся в верхних слоях сусла, куда они поднимаются образующейся углекислотой и пеной. Брожение идет с незначительным повышением температуры (20–28°С). Через 5–7 сут. верховое брожение заканчивается, а дрожжи за 1–2 сут. до окончания брожения образуют хлопья и оседают на дно бродильных емкостей. Дрожжи низового брожения (S. vini) развиваются в анаэробных условиях и при более низкой температуре
(6–12°С), поэтому процесс протекает медленно (8–10 сут.). Они также оседают на дно и образуют хлопьевидный осадок. Зна- чение спиртового брожения очень велико. Этот процесс лежит в основе виноделия, пивоварения, производства спирта, хле- бопечения. Дрожжи используют и для приготовления кормо- вого белка.
При молочнокислом брожении происходит распад углево- дов, а также многоатомных спиртов и белков до молочной ки- слоты. В зависимости от того, какие продукты образуются при сбраживании глюкозы — только молочная кислота или также другие органические продукты и СО2 — молочнокислые бакте- рии подразделяют на гомоферментативные и гетероферментатив- ные, что отражает различия в путях катаболизма углеводов.
Гомоферментативное молочнокислое брожение. Гомофер- ментативные молочнокислые бактерии образуют только одну молочную кислоту, что обусловлено кокковыми и палочковид- ными молочнокислыми бактериями. Кокковые формы вклю- чены в род Streptococcus, к которому отнесены виды Str. lactis, Str. cremoris, Str. diacetilactis, Str. thermophilus.
Str. lactis (молочнокислый стрептококк) — клетки оваль- ной формы, расположенные в виде цепочек. Он неподвижный, грамположительный. Кроме моносахаридов сбраживает лакто- зу и мальтозу. Оптимальная температура развития — 30–35°С. Str. cremoris (сливочный стрептококк) — клетки овальной фор- мы, расположенные в виде длинных цепочек. Образует летучие кислоты. Их используют при производстве кисломолочных про- дуктов. Str. diacetilactis образует в молоке и молочных продук- тах повышенное количество летучих кислот и ароматические вещества, обладает способностью сбраживать лимонную кисло- ту. Str. thermophilus может развиваться при повышенной тем- пературе (около 50°С), сбраживает сахарозу.
Палочковые бактерии включены в род Lactobacterium, ха- рактеризуются значительным разнообразием форм — от корот- кой кокковидной до длинной нитевидной. Располагаются в виде единичных клеток, парами или цепочками. Бактерии этого рода разделены на две группы. Представители первой группы хоро- шо растут при 45°С, слабо развиваются при 20°С и не растут при 15°С. К ним относятся виды Lact. dethrueckii, Lact. lactis, Lact. bulgaricus, Lact. acidophilus и др. Представители второй
группы при развитии в молоке образуют короткие цепочки. Эта группа менее активных молочнокислых палочек; хорошо развиваются при 15–38°С, оптимум для них — 30°С. К ним относятся виды Lact. casei и Lact. plantarum.
Гетероферментативное молочнокислое брожение. Вызывают представители родов Leuconostoc, Lactobacterium, Bifidobacterium. Бактерии рода Leuconostoc имеют вид сферических клеток, располагающихся одиночно, парами или короткими цепочками. Это факультативные анаэробы, неподвижные, грамположительные, оптимум температуры 20–30°С. Род включает виды L. mesenteroides, L. dextranicum, L. citrovorum и др.
Род Lactobacterium включает виды L. fermentum, L. brevis и др. Обычно они встречаются на растениях, в хлебных заквасках. Это небольшие палочки, грамположительные, температурный максимум около 45°С.
К роду Bifidobacterium отнесены бактерии, имеющие прямые или разветвленные палочки, раздвоенные V-формы, неподвижные, грамположительные, анаэробы; температурный оптимум для них 36–38°С. Бифидобактерии — обитатели кишечника человека и животных. Типичный представитель рода — Bac. bifidum.
Антагонизм молочнокислых бактерий по отношению к условно-патогенным и патогенным микробам обусловливается действием молочной кислоты, которую они продуцируют, а также образованием антибиотических веществ. Str. lactis синтезирует лизин, Str. cremoris — диплококкин, L. acidophilus — ацидофилин и лактоцидин, L. plantarum — лактолин, L. brevis — бревин и др.
Пропионовокислое брожение осуществляют бактерии рода Propionibacterium. Они представляют собой неподвижные полиморфные палочки, образующие булавовидные формы с одним концом закругленным, другим конусообразным. Располагаются они одиночно, парами, цепочками; грамположительные, спор не образуют; анаэробы, оптимальные температура роста — 30–37°С, рН — 7,0. Встречаются на растениях, в почве, в желудочно-кишечном тракте жвачных животных. Источниками энергии для них служат углеводы, органические кислоты, спирты и другие вещества. Пропионовокислые бактерии способны сбраживать молочную кислоту, образовавшуюся в результате брожения, вызванного молочнокислыми бактериями. Конечные
продукты пропионовокислого брожения — пропионовая и уксусная кислоты, СО2 и вода:
3С3Н6О3 = 2С3Н6О2 + СН3СООН + СО2 + Н2О.
Пропионовокислые бактерии используют для получения витамина В12, который они образуют в значительных количествах.
Маслянокислое брожение обусловливают некоторые бактерии из рода Clostridium. Типичный представитель — С. butyricum. Это крупная палочка длиной 2–10 мкм, подвижная, грамположительная, анаэроб, образует споры. В качестве источника углерода использует моно-и дисахариды, некоторые полисахариды (декстрин, крахмал), молочную, пировиноградную кислоты, маннит, глицерин и другие соединения. Источником азота служат разнообразные вещества — аминокислоты, аммиачные соединения и др.
Маслянокислое брожение начинается с разложения сахаров в пировиноградную кислоту. Конечные продукты из пировиноградной кислоты образуются в результате реакций, катализируемых несколькими ферментными системами. Суммарное уравнение маслянокислого брожения имеет следующий вид:
4С6Н12О6 = 3Н3СН2СООН + 2СН3СООН + 8СО2 + 8Н2.
Иногда данное брожение бывает нежелательным. Например, при его развитии в заквашиваемых продуктах, силосе белковая субстанция разлагается, образуемая масляная кислота ухудшает качество корма, происходит его прогоркание. Животные плохо поедают такой корм.
Уксуснокислое брожение. Микробиологический процесс, при котором этиловый спирт окисляется до уксусной кислоты под влиянием уксуснокислых бактерий. Бактериальная природа этого процесса была установлена в 1868 г. Л. Пастером.
Уксуснокислые бактерии — короткие палочки, подвижные и неподвижные, грамотрицательные, не образующие спор, строгие аэробы. Все виды уксуснокислых бактерий объединены в род Acetobacter. Типичными представителями являются A. aceti, A. pasteurianum и др. A. aceti — короткая палочка, неподвижная, грамотрицательная, располагается цепочками. На поверхности среды (пива, не крепленных спиртом сухих вин) образует пленку. Оптимальная температура роста — 34°С.
A. pasteurianum по форме напоминает Acetobacter aceti. На по верхности среды образует сухую складчатую пленку. При со единении с йодом приобретает синюю окраску.
Уксуснокислые бактерии используют для производства пи щевого уксуса из вина и спирта в промышленных условиях. Данное брожение играет важную роль при силосовании кормов.
КРУГОВОРОТ ФОСФОРА,
ЖЕЛЕЗА И СЕРЫ
Фосфор имеет большое значение в жизнедеятельности ор ганизма. Без него не могут синтезироваться белки, он входит в состав ядерного вещества и многих ферментов. В почве он со держится в основном в органической, не усвояемой растения ми форме и в виде трудноусвояемых минеральных соединений. Органические соединения фосфора попадают в почву вместе с растительными остатками, трупами животных и отмершими микроорганизмами. Они представлены нуклеопротеидами, нук леиновыми кислотами и др. Роль микробов в превращении фос фора сводится к двум процессам: минерализации фосфора, вхо дящего в состав органических веществ, и превращению фосфор нокислых солей из слаборастворимых в хорошо растворимые, доступные для растений.
Органические и неорганические соединения фосфора раз лагаются бактериями родов Pseudomonas, Bacillus (Вас. megaterium), грибами из родов Penicillium, Aspergillus, Rhizopus и др.
Железо широко распространено в природе, встречается в виде органических и минеральных соединений, входит в состав животных и растительных организмов. Содержится в гемогло бине крови и дыхательных ферментах — цитохромах. При не достатке железа у животных развивается анемия, растения те ряют зеленую окраску. Оно бывает в форме нерастворимого окисного Fe3+ и растворимого закисного Fe2+. Перевод орга нического железа из окисного в закисное и наоборот осущест вляется в основном микроорганизмами, получившими назва ние железобактерий. К ним относятся нитчатые бактерии (Leptothrix, Crenothrix), бактерии рода Galionella и др.
Железобактерии — аэробы, встречающиеся в болотах, пру дах, железистых источниках. В таких водоемах они окисля ют закиси железа. В процессе деятельности железобактерий
образуется окись железа. Скопление отмерших железобактерий (гидрат окиси железа) образует на дне стоячих водоемов залежи болотной руды.
Сера в организме животных и растений входит в состав серосодержащих аминокислот (цистеин, цистин, метионин), витаминов группы В (биотин, тиамин), много ее в волосах и перьях. Органические соединения серы в почве представлены останками животных и растений. При разложении в почве органических серосодержащих соединений, а также при восстановлении солей серной, сернистой и серноватистой кислот образуется сероводород, ядовитый для растений и животных. Сероводород окисляется серобактериями в безвредные, доступные для растений соединения. Серобактерии подразделяют на нитчатые, тионовые, фотосинтезирующие пурпурные и зеленые.
Нитчатые серобактерии представлены несколькими родами: Beggiatoa, Thiothix и др. Это длинные нити, которые состоят из множества клеток, аэробы, подвижные и неподвижные, окисляют сероводород до серной кислоты.
Тионовые бактерии относятся к роду Thiobaccilus. Это грамотрицательные палочки, подвижные, не образующие спор, окисляют серу и ее соединения.
Фотосинтезирующие зеленые и пурпурные серобактерии имеют различные морфологические формы — кокки, палочки, спириллы, живут в строго анаэробных условиях и развиваются на свету при наличии в среде сероводорода или тиосульфита натрия.
1.7. ГЕНЕТИКА МИКРООРГАНИЗМОВ
Генетика — наука о наследственности и изменчивости организмов. Ее цель заключается в изучении и анализе законов передачи наследственных признаков от поколения к поколению, а также выяснении механизмов, обеспечивающих наследование на всех уровнях организации живых существ (особь, клетка).
Под наследственностью понимают способность живых организмов воспроизводить одни и те же или сходные морфологические, физиологические и биологические свойства в ряду поколений благодаря передаче материальных задатков (генов) от родителей потомкам.
МАТЕРИАЛЬНЫЕ ОСНОВЫ
НАСЛЕДСТВЕННОСТИ
Основная генетическая структура прокариотной клетки — это хромосома, представляющая собой громадную молекулу ДНК в виде двойной спирали, замкнутой в кольцо. Она являет! ся носителем генетической информации и называется геномом. Молекула состоит из функционально неоднородных генетиче! ских детерминант — генов, которые располагаются линейно вдоль хромосомы. Схема, отражающая расположение генов на хромосоме, называется генетической картой. Бактерии, как и все прокариоты, гаплоидны, т. е. генетический материал у них представлен одним набором генов. Функциональная единица наследственности — ген. Все свойства организма однозначно определены его генами, в них записана информация относитель! но всех свойств, присущих клетке. Они определяют особенно! сти клеточных компонентов, их структуру и функцию. Каж! дый ген может существовать в виде ряда структурных форм, или аллелей. Совокупность аллелей всех генов клетки состав! ляет ее генотип.
Синтез белка. Перед делением клетки происходит иден! тичная редупликация, или репликация генов. Этот процесс объясняют, исходя из модели структуры ДНК, предложенной Д. Д. Уотсоном и Ф. Криком, из механизма удвоения ДНК. Две цепи двойной спирали ДНК комплементарны друг другу. На каждой цепи из структурных элементов ДНК — дезоксирибо! нуклеозидтрифосфатов — синтезируется новая цепь, при этом с каждым спаривается комплементарное ему основание, так что каждая из двух новых цепей опять будет комплементарна ро! дительской цепи. Обе новые двойные спирали состоят из одной родительской и одной вновь синтезированной цепи. Эта точная репликация ДНК гарантирует сохранение генетической инфор! мации. ДНК, будучи носителем наследственной информации, тем не менее сама не служит матрицей для синтеза полипепти! дов. Биосинтез белков происходит на рибосомах, которые не! посредственно с ДНК не соприкасаются.
Передачу записанной в ДНК информации к местам синтеза белка осуществляет матричная, или информационная, рибонуклеиновая кислота (мРНК или иРНК). Она состоит из одной цепи и очень напоминает одиночную цепь ДНК с тем отличием,
что тимин ДНК в РНК заменен урацилом. На одной из цепей ДНК синтезируется мРНК, причем механизм этого процесса схо- ден с механизмом репликации ДНК. Таким образом, при синте- зе мРНК просто копируется нуклеотидная последовательность ДНК. Этот процесс называют транскрипцией (переписыванием).
Генетический код. Каждый ген представляет собой опреде- ленный участок молекулы ДНК. Специфическая информация, содержащаяся в гене, определена последовательностью основа- ний в цепи ДНК. «Алфавит», с помощью которого записана эта информация ДНК, включает четыре «буквы» основания: аде- нин (А), гуанин (G), тимин (Т) и цитозин (С). В мРНК вместо тимина — урацил (U). Специфичность ферментных белков, син- тез которых контролируют гены, обусловлена последователь- ностью аминокислот в полипептидных цепях. Каждая амино- кислота определяется группой из трех соединений нуклеоти- дов — триплетом, или кодоном.
Аминокислоты соединяются в полипептидную цепь в по- рядке, определяемом триплетами мРНК. В этом процессе уча- ствуют мРНК, транспортные РНК (тРНК), рибосомы, ряд фер- ментов и другие факторы. Соединение аминокислот происхо- дит на рибосомах. К мРНК обычно присоединяется несколько рибосом, так что на одной и той же матрице одновременно син- тезируется несколько полипептидных цепей.
Такой комплекс одной мРНК с рибосомами называется полисомами. В результате нуклеотидная последовательность ДНК представляет собой закодированную «инструкцию», определяю- щую (при посредстве мРНК) структуру специфического белка. Таким образом, процесс биосинтеза белка происходит в два эта- па: первый — транскрипция, т. е. переписывание информации с ДНК на мРНК; второй — трансляция, т. е. реализация этой информации в рибосомах, образование белковой молекулы.
НАСЛЕДСТВЕННОСТЬ
И ИЗМЕНЧИВОСТЬ
Наследственность неразрывно связана с изменением специ- фических свойств под действием различных факторов. Учение о наследственности и изменчивости организмов было основано Ч. Дарвином в 1859 г., который доказал, что все существую- щие на земле виды животных и растений произошли путем из-
менчивости из немногих или какой-нибудь одной формы. Эволюция по Дарвину идет путем естественного отбора ненаправленных случайных изменений.
Основные законы генетики были открыты и сформулированы чешским естествоиспытателем Г. Менделем, затем подробно изучены Т. Морганом, А. Вейсманом, Н. И. Вавиловым и др.
Изменчивость основных признаков. Изучение изменчивости началось на первых этапах зарождения микробиологии, с исследований Л. Пастера, показавшего возможность ослабить вирулентные свойства у микроорганизмов при воздействии различных факторов (физических, химических, биологических). Однако на ранних этапах основное внимание уделяли изменчивости основных признаков микроорганизмов.
Изменчивость морфологических признаков. Под влиянием физических, химических, биологических агентов у многих микроорганизмов наблюдается изменение формы и размеров. Например, при добавлении стрептомицина к питательной среде клетки сальмонелл значительно удлиняются. При длительном росте бактерий в одной и той же среде возникает полиморфизм, обусловленный влиянием накопившихся в ней продуктов жизнедеятельности.
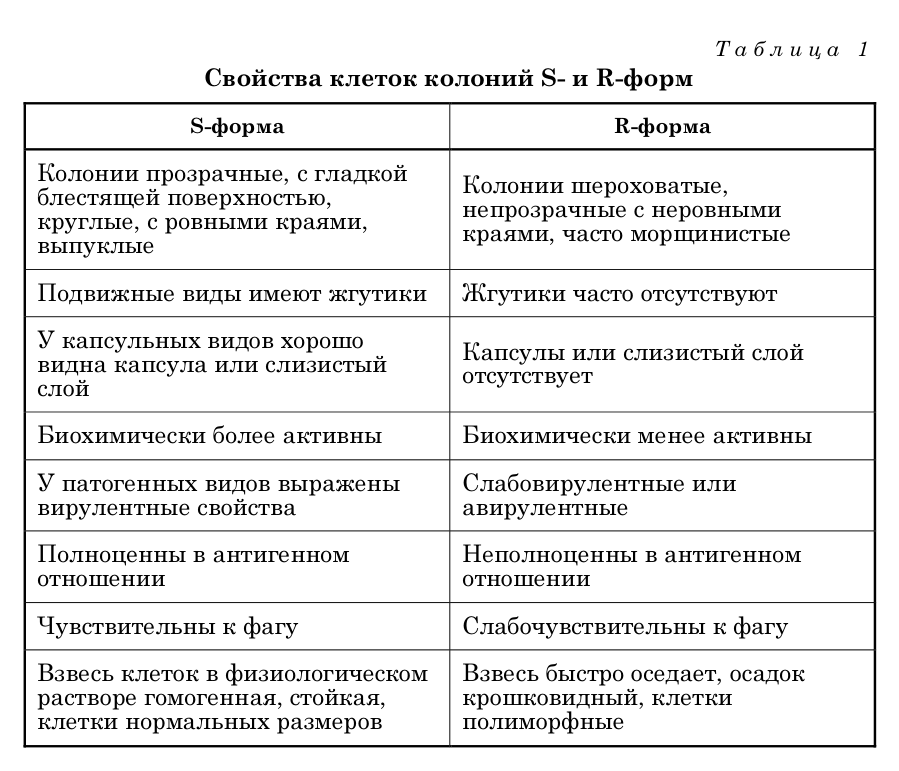
Культуральная изменчивость. Одна из форм культуральной изменчивости — феномен диссоциации, т. е. разъединение популяции бактерий и возникновение S-и R-форм. При посеве на пластинки МПА в чашках Петри чистой культуры микроорганизма образуются колонии двух основных типов: S-форма — гладкие (от англ. smooth — гладкий); R-форма — шероховатые (от англ. rough — шероховатый). Между этими формами существуют переходные М-и О-формы (слизистая и переходная). Свойства клеток колоний S-и R-форм представлены в табл. 1.
Часто вырастают очень мелкие (карликовые) колонии. Необходимо помнить, что бактерии в R-форме способны утратить специфическую агглютинабельность, что значительно затрудняет идентификацию выделенных культур. Для абсолютного большинства патогенных микробов S-форма колоний является нормой. Однако у некоторых патогенных микробов (Вас. anthracis, Mycobacterium tuberculosis) при шероховатой форме колоний сохраняются вирулентные свойства.
По современным представлениям, в основе диссоциации лежат мутации, спонтанно возникающие в естественной среде и в условиях культивирования на искусственных питательных средах.
Изменчивость ферментативных (биохимических) свойств. Бактерии каждого вида имеют определенный набор ферментов, благодаря которым усваивают различные питательные вещест" ва. Эти ферменты вырабатываются на определенных питатель" ных субстратах и предопределены генотипом. В процессе жиз" недеятельности бактерий обычно функционируют не все гены, ответственные за синтез соответствующих ферментов. В гено" ме бактерий всегда есть запасные возможности, т. е. гены, оп" ределяющие выработку адаптивных ферментов. Например, ки" шечная палочка, растущая на среде без углевода лактозы, не синтезирует фермент лактозу, но если пересеять культуру на среду с лактозой, то она начнет вырабатывать этот фермент. Адаптивные ферменты позволяют микробам приспосабливать" ся к определенным условиям существования.
Изменчивость биологических свойств. В 1880 г. Л. Пастер впервые показал, что патогенная культура возбудителя холеры кур после длительного выдерживания в условиях термостата потеряла патогенные свойства, но сохранила иммуногенные свойства, что было использовано с целью профилактической вакцинации против холеры кур.
В 1881 г. Л. Пастер впервые приготовил вакцину против сибирской язвы и произвел успешную вакцинацию коров. Для ее приготовления он выращивал возбудителя сибирской язвы при температуре 42,5°С в течение 12 и 24 сут., что привело к снижению его патогенности. Л. С. Ценковский, используя пастеровский тринцип, в 1883 г. приготовил живую вакцину против сибирской язвы из взвеси спор ослабленного возбудителя.
В 1885 г. Л. Пастер путем 133 последовательных интрацеребральных заражений кроликов изменил свойства возбудителя бешенства. Вирус оказался авирулентным при подкожном введении и предупреждал развитие болезни у людей, покусанных бешеными животными. Л. Пастер назвал полученный им вирус фиксированным (virus fixe).
А. Кальметт и К. Герен во Франции в 1919 г. путем длительных пассажей на картофельной среде с желью и глицерином при температуре 38°С значительно ослабили патогенные свойства возбудителя бычьего вида туберкулеза. Пересевы производили каждые 14 сут. в течение 13 лет. Полученный таким образом штамм микобактерий туберкулеза бычьего вида был назван вакциной БГЖ (BCG — фр. Baсilla Calmet — Geren); ее с успехом применяют для прививок людей против туберкулеза.
Путем воздействий физических и химических факторов были получены самые разнообразные варианты микроорганизмов, имеющие большое практическое значение, так как служат «сырьем» в производстве живых вакцин, антибиотиков и др.
У бактерий различают фенотипическую, или модификационную (ненаследственную), и генотипическую (наследственную) изменчивость.
Фенотипическая изменчивость. Проявление наследуемых морфологических признаков и физиологических процессов у индивидуумов называется фенотипом. Сходные по генотипу микроорганизмы могут существенно различаться по фенотипу, т. е. по способу проявления наследственных признаков.
Фенотипические различия между микроорганизмами, одинаковыми по генотипу, называются модификациями (фенотипическими адаптациями). Они, как правило, существуют до тех пор, пока действует вызвавший их специфический фактор окружающей среды, не передаются потомкам и не наследуются ими. Это адаптивная реакция на внешние раздражители. Следовательно, роль фенотипических изменений сводится к обеспечению выживаемости микробных популяций в изменившихся условиях среды. Они выражаются в изменении формы и размера бактерий, биохимической активности и ряда других свойств.
Генотип также подвержен изменениям. Генотипическая изменчивость играет большую роль в эволюции организмов, так как если бы клетки не обладали способностью к изменению генотипа, то любое неблагоприятное изменение условий среды привело бы к вымиранию вида. Например, появление в культуре бактериофага вызвало бы полную ее гибель, если бы гены, определяющие фагочувствительность, не подвергались изменениям и клетки в силу этого не приобретали свойство фагорезистентности.
В основе генотипической изменчивости лежат мутации и рекомбинации. Они происходят в структуре ДНК (генетическом аппарате клетки) и проявляются в стабильности изменений каких-либо свойств.
Под мутацией (от лат. mutatio — изменение) понимают внезапные, скачкообразные изменения наследственных свойств. Основу этого явления составляют качественные или количественные изменения последовательности нуклеотидов в ДНК, которые могут возникать под влиянием эндогенных факторов или при действии химических и физических мутагенов. Бактерии с измененными признаками называются мутантами. Различают спонтанные и индуцированные мутации.
Спонтанные (самопроизвольные) мутации возникают под влиянием неизвестных причин. Частота спонтанных мутаций мала — 10–5–10–10. Один из распространенных типов спонтанных мутаций микроорганизмов — ауксотрофность, т. е. утрата способности к синтезу, например, лейцина, которой обладали клетки родительского типа. В этом случае мутант будет расти только на той среде, к которой добавлена эта аминокислота. Такой мутант называют ауксотрофным по лейцину, т. е. нуждающимся в лейцине. Спонтанные мутации служат основным источником естественной изменчивости микроорганизмов и лежат в основе эволюции, обусловливая разнообразие генети- ческого материала.
Индуцированные (направленные) мутации проявляются в результате обработки микроорганизмов специальными мутаге- нами (химическими веществами, физическими факторами — температурой, ультрафиолетовыми и ионизирующим излуче- ниями и др.). В основе механизма действия мутагенов лежит их прямое или косвенное влияние на ДНК или на ее предшест- венников — основания.
Бактериальные мутации могут проявляться следующим образом: изменение морфологических свойств; возникновение устойчивости к лекарственным препаратам; потеря способно- сти синтезировать аминокислоты; утилизирование углеводов и других питательных веществ; ослабление патогенных свойств и др. Например, методом направленных мутаций получены жи- вые вакцины с ослабленной вирулентностью, которые с успехом используют для профилактики листериоза (вакцина АУФ), саль- монеллеза свиней (вакцина ТС–177) и др.
Генетические рекомбинации. Кроме мутаций, ведущих к изменению генотипа, у бактерий известны три способа переда- чи генетической информации от донорской клетки с одним ге- нотипом реципиенту с другим генотипом. Эта передача осуще- ствляется путем трансформации, трансдукции и конъюгации. В результате генетического обмена между бактериями образу- ются рекомбинанты, т. е. бактерии, обладающие свойством обо- их родителей. Клетки-рекомбинанты в основном сохраняют ге- нотип бактерии-реципиента, приобретая отдельные свойства бактерии-донора. Это связано с тем, что рекомбинант несет хро- мосому реципиента, в которую включаются только отдельные фрагменты ДНК донора.
Трансформация (преобразование, перестройка) — измене- ние генома бактерии-реципиента в результате поглощения из среды свободного фрагмента ДНК клетки-донора. Данное явле- ние у бактерий впервые выявил Ф. Гриффите. Он одновремен- но ввел мышам две культуры пневмококков: первая — непато- генная бескапсульная (R-штамм) и вторая — патогенная с кап- сулой (S-штамм), убитая нагреванием. Из крови погибших
мышей были выделены патогенные с капсулой бактерии пневмококка третьего типа. Это означало, что убитые нагреванием клетки передали способность образовывать капсулу непатогенному бескапсульному штамму. В 1944 г. О. Эвери, К. Мак-Леод и М. Мак-Карти установили, что трансформирующим веществом служит ДНК. В процессе трансформации различают пять стадий: I — адсорбция трансформирующей ДНК на поверхность микробной клетки; II — проникновение ДНК в клетку-реципиент; III — спаривание внедрившейся ДНК с хромосомными структурами клетки; IV — включение участка ДНК клетки-донора в хромосомные структуры реципиента; V — дальнейшее изменение нуклеотида в ходе последующих делений. Путем трансформации могут быть перенесены различные признаки: синтез капсульного полисахарида, устойчивость к антибиотикам, синтез ферментов и т. п. Обычно при трансформации изменяется один какой-нибудь признак. Процесс трансформации наблюдается среди бактерий различных семейств и родов.
Трансдукция — передача ДНК от клетки-донора клеткереципиенту при участии бактериофагов. Трансдуцирующими свойствами обладают в основном умеренные фаги. Размножаясь в бактериальной клетке, они включают в состав своей ДНК часть бактериальной ДНК и передают ее после проникновения клетке-реципиенту. Различают три типа трансдукции: общую, специфическую и абортивную. При общей трансдукции фаг выступает в качестве «пассивного» переносчика генетического материала бактерий, захватывая в свою головку фрагмент бактериальной ДНК вместо своего генома. Эти фаги получили название дефектных фагов. Один и тот же фаг может трансдуцировать различные признаки: ферментативную активность, устойчивость к антибиотикам, подвижность, серологические и вирулентные свойства и др.
Специфическая трансдукция осуществляется фагами, геном которых при лизогенизации соединяется только с определенным участком хромосомы бактерий, т. е. фаг имеет определенную точку прикрепления на хромосоме. Поэтому при освобождении такой фаг захватывает только рядом расположенную строго определенную область хромосомы бактерий и передает ее реципиентной клетке, принося ей новый ген.
Абортивная трансдукция осуществляется переносом фагом участка ДНК клетки-донора в клетку-реципиент, которая не включается в ее геном, а следовательно, проявление нового признака не наблюдается.
Конъюгация (спаривание) — передача генетического материала клетки-донора клетке-реципиенту при непосредственном контакте. Способность бактериальной клетки конъюгировать связана с наличием в ней полового фактора F (от англ. fertility — плодовитость) — внехромосомной автономной детерминанты. Конъюгирующие клетки соединяются через конъюгационный мостик, образованный половой ворсинкой F-пили донорской клетки. Перенос генетического материала происходит в одном направлении — от донорской (мужской F+) клетки к реципиентной (женской F–). При контакте клетки F+ передают бактерии-реципиенту плазмиду F в виде цельной структуры, причем бактерия F+ не теряет своей донорской способности, в то же время клетки F– превращаются в донорские, получая F-фактор, и становятся способными к конъюгации. Среди популяции клеток-доноров есть бактерии, которые могут при конъюгации передавать и фрагменты бактериальной хромосомы. Эти штаммы получили название Hfr (от англ. high frequency of recombination) — бактерии с высокой частотой рекомбинации. У бактерий Hfr половой фактор находится в хромосоме. При конъюгации клеток Hfr и F– происходит разрыв хромосомы бактерии в месте прикрепления F-фактора.
Таким образом, все три процесса генетической рекомбинации у бактерий — трансформация, трансдукция и конъюгация — различны по форме, но одинаковы по существу, так как в результате каждого процесса происходит перенос фрагмента ДНК от одной клетки к другой. При трансформации в бактерию-реципиент входит свободная ДНК; при трансдукции фаг захватывает участок хромосомы бактерии-донора и передает реципиенту; в процессе конъюгации происходит перенос фрагмента ДНК при образовании цитоплазматического мостика между бактериями.
Кроме хромосомы у некоторых бактерий присутствуют дополнительные внехромосомные генетические детерминанты, названные плазмидами. У бактерий обнаружено большое разнообразие плазмид, среди которых наиболее изучены половой
фактор (F), фактор множественной лекарственной устойчивости (R), факторы бактериоциногении (Col), плазмиды, контролирующие у Е. coli синтез энтеротоксина (Н1у), детерминирующие синтез поверхностных антигенов (К88, К99) и др. Плазмиды расположены в цитоплазме, имеют кольцевую структуру и способны к саморепликации. Общее для плазмид свойство заключается в том, что они придают клетке дополнительные, необязательные для нее функции, но чаще всего выгодные. Они могут быть потеряны бактерией, однако это не влияет на основные свойства клетки. Плазмиды (F-фактор и др.), способные интегрировать в хромосому и реплицировать вместе с ней, получили название эписом.
Большинство плазмид обладают способностью передаваться от бактерии к бактерии при конъюгации. Такие плазмиды получили название конъюгативных, или трансмиссивных. Они могут также передаваться при трансдукции и при обычном делении клетки.
Фактор множественной лекарственной устойчивости. R-фактор — типичная плазмида, представляющая собой двуспиральную молекулу ДНК, в которой определены гены, ответственные за саморепликацию и перенос резистентности в реципиентную клетку, — фактор переноса устойчивости RTF (от англ. resistance transfer factor) и отдельные гены, обозначаемые буквой r (от resistance), детерминирующие устойчивость к конкретному антибиотику. R-фактор может передаваться при трансдукции и обычном делении бактериальной клетки. Механизм, определяющий способность R+-бактерий превращать антибиотики в неактивную форму, связан с действием на антибиотики особых специфических ферментов, синтез которых детерминируется R-плазмидой.
Плазмиды Col (англ. colicinogeny — колициногенность) детерминируют синтез белковых веществ, называемых колицинами, которые подавляют рост и размножение чувствительных к ним бактерий, в первую очередь близкородственных. Этот феномен впервые обнаружен в 1925 г. A. Gratia у штамма Е. coli, поэтому и назван колициногенией. В дальнейшем было установлено, что и многие бактерии других видов выделяют белковоподобные вещества, летальные для близких видов. Вещества эти получили название бактериоцинов, а феномен — бактериоциногении.
Е. coli детерминируют синтез различных типов колицинов, обозначаемых заглавными буквами латинского алфавита: А, В, С, D и т. д. Механизм действия колицинов заключается в следующем: колицины адсорбируются на чувствительных клетках (лишенных Col$фактора) и, не проникая внутрь клет$ ки, вызывают нарушение метаболизма, что приводит клетку к гибели.
Носительство плазмид — широко распространенное явле$ ние среди микроорганизмов, их наличие дает клетке опреде$ ленные преимущества. Плазмиды играют важную роль в эво$ люции бактерий, участвуя в процессе естественного отбора.
Принципы генетической инженерии. В формировании ге$ нетической инженерии главную роль сыграла генетика микро$ организмов, а именно достижения современной молекулярной генетики микроорганизмов и открытые ею закономерности, ее идеи и методы.
Возникновение генетики микроорганизмов можно датиро$ вать 1940$ми гг. Первые опыты по конструированию рекомби$ нантных молекул ДНК вне живой клетки относятся к началу 1970$х гг. Таким образом, понадобилось всего 30 лет, чтобы преодолеть путь от первых опытов с грибами, бактериями и фагами в качестве генетических объектов до расшифровки тон$ кой структуры их генетического материала, принципов его ор$ ганизации и функционирования.
Первым объектом исследования генетики микроорганизмов была плесень Neurospora crassa, следующими были грибы, бак$ терии и вирусы бактерий (бактериофаги). Наиболее удачным оказалось использование штамма К$12 Е. coli, так как эта бак$ териальная структура содержала, как выяснилось позднее, про$ фаг А — будущий классический объект исследования молеку$ лярной генетики.
Таким образом, уже через несколько лет стало очевидно, какие огромные перспективы открывает применение микроор$ ганизмов для генетических исследований в силу простоты их организации, быстроты размножения и возможности исследо$ вания синтетических питательных сред.
В 1952 г. в опытах на сальмонелле Н. Циндер и Э. Ледерберг описали перенос генетического материала посредством бакте$ риофага.
Значение этих исследований, а также дальнейшего изучения генетической трансформации заключалось в разработке на их основе методов генетического анализа. С их помощью в течение нескольких лет были построены генетические карты у Е. coli, Salmonella typhimurium и Вас. subtilis, т. е. установлено относительное расположение на хромосоме различных генетических локусов. Аналогичный путь прошла генетика бактериофагов, разработавшая свои методы генетического анализа и построения генетических карт. В результате этих исследований в организации генетических локусов у бактерий и бактериофагов были выявлены общие закономерности: наличие одной группы сцепления (хромосомы) и групповое расположение генетических локусов с родственными функциями.
Методы картирования генов и их мутаций снабдили исследователей тонким инструментом анализа основных генетических процессов, протекающих в бактериальных клетках. Блестящих результатов благодаря им достигли А. Львов и Ф. Жакоб в своих исследованиях генетического материала в процессе биосинтеза белка.
На основании этих исследований была предложена первая модель оперона. Согласно ее концепции, структурные гены бактерий организованы в функциональные единицы, находящиеся под контролем генов-регуляторов. Продукты последних — репрессоры — подавляют активность структурных генов, координированно регулируя синтез их белковых продуктов. На проксимальном конце оперона расположены регуляторные участки — операторы, обеспечивающие взаимодействие с репрессорами.
Исходя из модели оперона, Ф. Жакоб и Ж. Моно выдвинули ряд предположений. Одно из них заключалось в том, что при присоединении структурных генов одного оперона к регуляторным участкам (промотору и оператору) другого характер регуляции первого должен измениться. Действительно, в результате выбрасывания с помощью делеции участка хромосомы Е. coli, разделяющего два оперона — лактозный и пуриновый, возник «гибридный» оперон, в котором синтез ферментов утилизации лактозы перестал подчиняться собственной системе контроля. Синтез этих белков не индуцировался более галактозидами, но подавлялся при добавлении пуринов.
В конце 1950-х — начале 1960-х гг. в результате успехов генетики микроорганизмов и молекулярной биологии сформировалось новое научное направление — молекулярная генетика. Одна из наиболее ярких страниц этого периода связана с открытием и расшифровкой рестрикции и модификации ДНК. Большой вклад в эту область внес В. Арбер. Он доказал, что в клетках бактерий, ограничивающих размножение фага g, синтезируются два фермента. Один из них, обозначенный как эндонуклеаза, расщепляет чужеродную ДНК, проникшую в клетку. Другой, названный метилазой, модифицирует проникшую ДНК путем метилирования нескольких пар нуклеоитидов, тем самым делая ДНК устойчивой к действию эндонуклеазы. В. Арбер сформулировал и основные принципы работы систем рестрикции — модификации, выработанные в процессе эволюции для защиты от проникновения неродственной ДНК.
Исследования В. Арбера привлекли к широкому поиску ферментов рестрикции у других бактерий и к разработке методов «нарезания» молекул ДНК на фрагменты, сыгравших решающую роль в развитии генетической инженерии.
Благодаря совершенствованию приемов и методов бактериальной генетики бактериофагов стало возможным перемещение генетического материала как в пределах одного генома, так и между разными геномами.
Манипулирование генетическим материалом в живой клетке, т. е. генетическая инженерия в условиях in vivo, достигло своего апогея в блестящей работе Бэквиса, Шапиро и др., которые выделили фрагменты ДНК, несущие гены утилизации лактозы Е. coli (лактозный оперон), в химически чистом виде.
С целью связать достижения бактериальной генетики в манипулировании генами с методологией генетической инженерии (конструирование гена in vitro) рассмотрим модель репликона и ее значение для реконструирования рекомбинантных молекул ДНК. Ф. Жакоб и Ж. Моно предположили, что каждая генетическая структура, будь то хромосома, плазмида или бактериофаг, составляет единицу репликации или репликон, который построен из двойной цепи ДНК, замкнутой в кольцо, и имеет генетические детерминанты, необходимые для его репликации. Последняя начинается в одном определенном участке молекулы и распространяется вдоль ее длины. Репликация
хромосомы бактерий начинается с одной точки и происходит двунаправленно. Гипотеза репликона позволила объяснить известные факты, что фрагменты хромосомы, перенесенные в другие клетки с помощью трансформации, трансдукции или конъюгации, не способны самостоятельно реплицироваться и могут передаваться дочерним клеткам только после их включения в хромосому. Именно в этом и состоит значение модели репликона для генетической инженерии. Клонирование генов может быть осуществлено только путем их включения в состав генетической структуры, обладающей собственным аппаратом репликации. Такая структура, обычно плазмида или ДНК фага, именуется векторной молекулой.
Методом генетической инженерии можно решить следующие задачи:
1) генетически изменить микроорганизмы с целью увеличения количества вырабатываемого ими необходимого продукта (аминокислот, ферментов, полисахаридов и др.);
2) осуществить перенос соответствующих генов млекопитающих и человека в микроорганизмы (бактерии, дрожжи) для синтеза с их помощью специфических белков, используемых в лечебно-профилактических целях (гормоны, вакцины, интерферон, ферменты, иммуноглобулины и др.);
3) генетически изменить высшие растения для поднятия их продуктивности (урожайности, калорийности, устойчивости к различным внешним факторам). Особое внимание уделяется получению растений, несущих гены азотфиксации и не нуждающихся в азотных удобрениях;
4) генетически изменить соматические клетки человека, страдающего наследственными заболеваниями, с помощью трансформации их in vitro или in vivo рекомбинированными ДНК, содержащими неповрежденный ген (генная терапия наследственных болезней).
Для создания генетически измененных организмов необходимо получить индивидуальный ген, кодирующий необходимый признак. Далее нужно подобрать вектор — молекулу ДНК, способную к самостоятельной репликации в клетке-реципиенте, создать рекомбинантную молекулу ДНК.
То есть соединить выделенный ген с вектором и ввести в подходящую клетку-реципиент.
На стыке микробиологии, генетики и молекулярной биологии бурно развивается новая отрасль науки и производства, называемая биотехнологией. Она использует методы генетической и клеточной инженерии для получения биологических веществ с заданными свойствами по производству антибиотиков, витаминов, аминокислот, вакцины, моноклональных антител, диагностикумов и т. д. Производство этих препаратов с использованием микробиологического синтеза более выгодно, чем химическим путем, некоторые препараты (бактериальные белки и ферменты) можно получить только путем микробиологического синтеза. Следует подчеркнуть, что возможности микробиологического синтеза весьма велики, так как время деления (удвоения) микробной клетки составляет всего 0,3–2,0 ч, скорость образования биомассы у растений в 500 раз, а у животных в 1000 раз меньше, чем у микроорганизмов. Одна микробная клетка синтезирует около 100 тыс. молекул белка в минуту. Современный органический синтез не обладает такой высокой производительностью.
У некоторых микробов обмен веществ направлен не на рост и размножение, а на синтез какого-либо вещества. Так, например, высокопродуктивный мутант для синтеза пенициллина образует за цикл развития до 0,5 кг пенициллина на каждый кг биомассы. Некоторые микроорганизмы могут синтезировать витамин В12 в количествах, превышающих их жизненные потребности в 100–200 раз. У продуцентов витамина В2 масса синтезированного витамина достигает 20% от массы клетки. В связи с этим целенаправленному поиску продуцентов, т. е. выбору штамма, обладающего наивысшей продуктивностью, придается большое значение.
Методы отбора включают в себя достижения молекулярной генетики и генной инженерии. Большинство биологических препаратов, используемых в настоящее время для профилактики инфекционных болезней животных, производят с использованием биотехнологии. Так, например, вакцины против многих инфекционных болезней изготавливают в промышленных масштабах из ослабленных штаммов возбудителей путем выращивания их в реакторах по соответствующей программе.
Достижения молекулярной биологии по изучению роли нуклеиновых кислот в процессах жизнедеятельности привели
к разработке совершенно новых методов диагностики болезней животных и человека на основе уникальных свойств ДНК и РНК. Это методы молекулярной гибридизации (ДНК"зонды) и полимеразной цепной реакции (ЦПР).
Таким образом, полученные с помощью биотехнологии ве" щества находят широкое применение в самых различных от" раслях медицины, ветеринарии, сельского хозяйства и промыш" ленности, а по мере развития молекулярной биологии и генной инженерии область и масштабы их использования значительно расширяются.
КОНТРОЛЬНЫЕ ВОПРОСЫ И ЗАДАНИЯ
1. В чем заключается отличие клетки прокариотов от клетки эука"
риотов?
2. Какие таксономические категории используют при классифика"
ции микроорганизмов?
3. Какую номенклатуру используют для обозначения видов микро"
организмов?
4. Какое понятие вкладывается в термин «вид» микроорганизмов?
5. Что такое штамм и клон?
6. Что такое чистая культура микроорганизма?
7. Каковы особенности строения прокариотной клетки?
8. Перечислите морфологические формы бактерий.
9. Что такое протопласты, сферопласты и L"формы бактерий?
10. Каковы особенности строения актиномицетов?
11. Каковы морфологические особенности риккетсий и микоплазм?
12. В чем особенности строения микроскопических грибов? Какие
критерии используют для дифференциации дрожжевой клетки
от плесени?
13. Какие минеральные вещества входят в состав клетки микроорга"
низмов?
14. Что представляют собой ферменты микробных клеток и какое
участие они принимают в жизнедеятельности клетки?
15. Назовите гидролитические и окислительно"восстановительные
ферменты.
16. Назовите типы питания микробов и раскройте их сущность.
17. На чем основана классификация микробов по типу дыхания?
18. Сформулируйте понятие о факультативных анаэробах, микроаэ"
рофилах, анаэробах, аэробах.
19. Перечислите способы размножения микроорганизмов.
20. Что такое стерилизация, асептика, антисептика, дезинфекция,
пастеризация?
21. В чем состоит механизм действия физических, химических и антибиотических веществ на бактерии?
22. Расскажите, на чем основана микробиологическая оценка качества дезинфекции.
23. В чем суть феномена бактериофагии?
24. Какова схема основных этапов взаимодействия фага с бактериальной клеткой?
25. Назовите основную микрофлору почвы.
26. Какая микрофлора присутствует в воде?
27. Какая микрофлора присутствует в воздухе?
28. Какова основная микрофлора кожи и дыхательных путей?
29. Какую микрофлору рубца вы знаете и чем характеризуется ее роль
в пищеварении?
30. Назовите микрофлору толстого отдела кишечника.
31. Расскажите о цикле превращений азота в природе.
32. Какие микроорганизмы обусловливают аммонификацию (минерализацию) белков?
33. Какие микроорганизмы обусловливают нитрификацию и денитрификацию?
34. Какие микроорганизмы обусловливают аэробное и анаэробное
разложение клетчатки?
35. Назовите микроорганизмы, разлагающие целлюлозу в рубце
жвачных животных.
36. Что вы знаете о микроорганизмах, вызывающих спиртовое брожение?
37. Расскажите о микроорганизмах, вызывающих гомо-и гетероферментативное молочнокислое брожение.
38. Назовите микроорганизмы, вызывающие пропионовокислое и
масляное брожение.
39. Какие микроорганизмы осуществляют превращение фосфора,
железа и серы в природе?
40. Сформулируйте цели и задачи генетики микроорганизмов.
41. Что вы понимаете под термином «ген»?
42. Что вы понимаете под термином «диссоциация культуры»?
43. Что означает термин «фенотипическая изменчивость»?
44. Что означает термин «генетическая изменчивость»?
45. Что вы понимаете под термином «мутация»?
46. Что такое трансформация, трансдукция и конъюгация?
47. Что такое колицины (бактериоцины)?
48. Что такое плазмиды?
49. Назовите задачи, которые решает генетическая инженерия.